1 молекула ДНК → интерфаза (S) → 2 одинаковые молекулы · к теории ↓
материнская цепьновая ДНКРНК-праймер
Шаги репликации
Дострой дочернюю цепь ДНК
ДНК-полимераза читает матрицу и подбирает нуклеотиды по принципу комплементарности: А–Т (2 водородные связи), Г–Ц (3 связи). Новая цепь антипараллельна матрице. Жми буквы или клавиши А, Т, Г, Ц на клавиатуре (латиница A, T, G, C тоже работает).
Выбери для каждой цифры, что ею обозначено. Как в 5–6 и 13–14 линиях ЕГЭ.
Что обозначено цифрами?
цепь с тяжёлым ¹⁵Nцепь с лёгким ¹⁴N
Гипотеза
Поколение на среде с ¹⁴N 0
ТЕОРИЯ: ДНК И РЕПЛИКАЦИЯ
всё, что нужно к ЕГЭ — от нуклеотида до теломер
01Нуклеиновые кислоты
ДНК
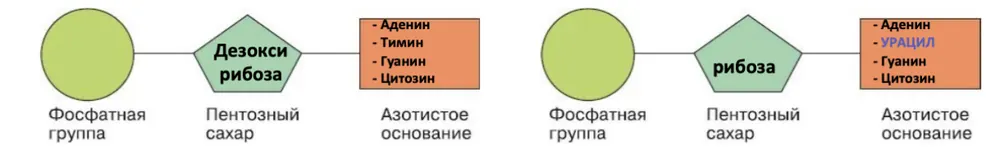
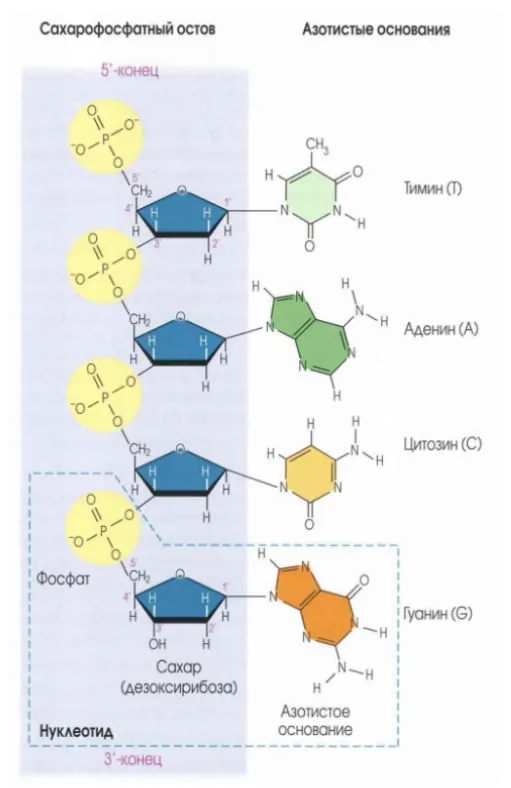
Дезоксирибонуклеиновая кислота — полимер, мономером которого является дезоксирибонуклеотид.
Он состоит из:
азотистого основания (А, Т, Г, Ц);
пятиуглеродного сахара дезоксирибозы;
остатка фосфорной кислоты.
РНК
Рибонуклеиновая кислота — полимер, мономером которого является рибонуклеотид.
Он состоит из:
азотистого основания (А, У, Г, Ц);
пятиуглеродного сахара рибозы;
остатка фосфорной кислоты.
Нуклеотид = фосфатная группа + пентоза (дезоксирибоза в ДНК, рибоза в РНК) + азотистое основание. В РНК вместо тимина — урацил.
02Строение ДНК
Основные характеристики:
Нерегулярный гетерополимер (состоит из разных мономеров, которые чередуются хаотично).
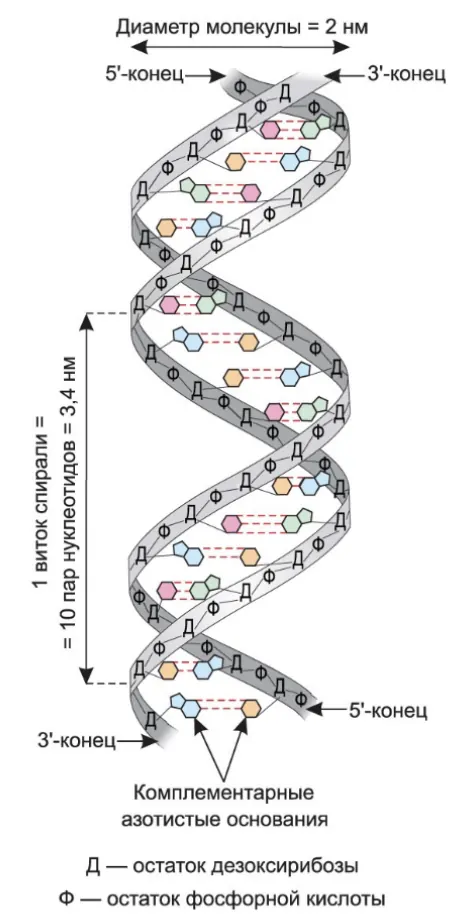
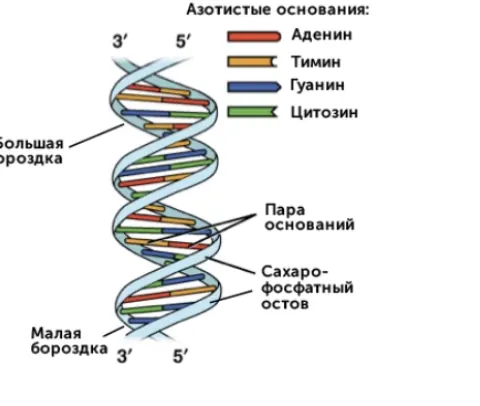
Имеет вид правозакрученной двойной спирали.
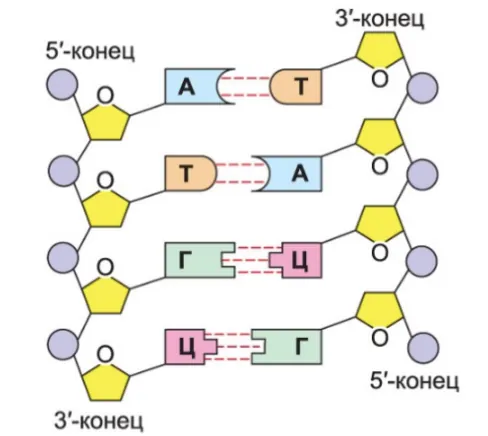
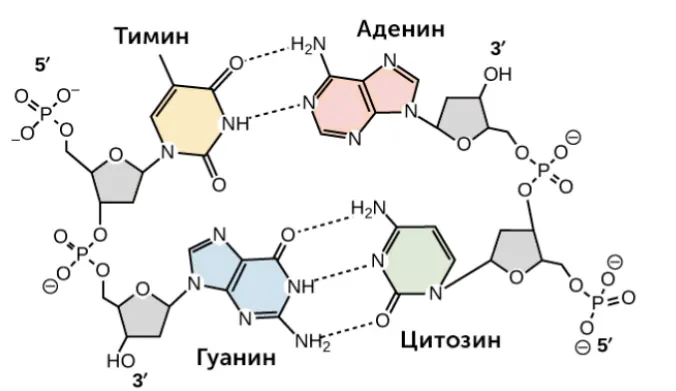
Цепи комплементарны и антипараллельны (против 3′-конца одной цепи находится 5′-конец другой).
Диаметр двойной спирали ДНК — 2 нм.
Расстояние между соседними нуклеотидами — 0,34 нм.
На один оборот спирали приходится 10 пар нуклеотидов (1 виток = 3,4 нм).
Цепи антипараллельны: 5′-конец одной напротив 3′-конца другойД — остаток дезоксирибозы, Ф — остаток фосфорной кислоты
В любом фрагменте ДНК содержание остатков гуанина всегда точно соответствует содержанию цитозина, а аденина — тимину (правило Чаргаффа). А + Ц = Т + Г
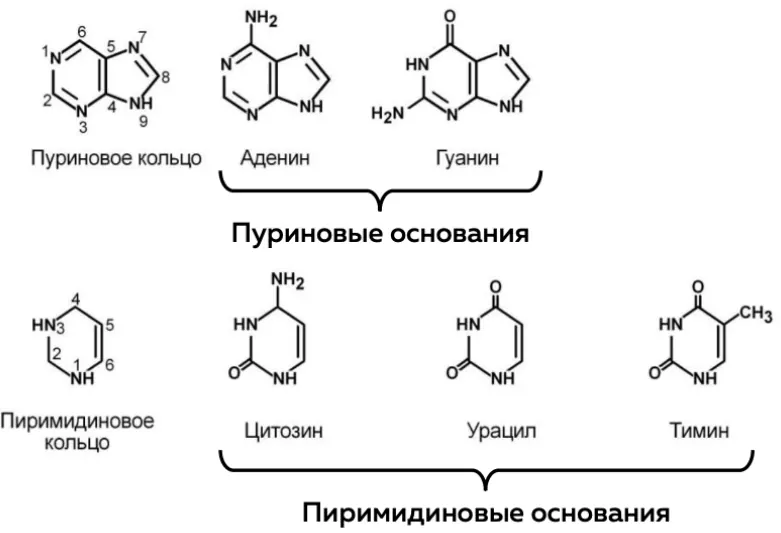
Пуриновые и пиримидиновые основания
04Уровни структуры ДНК
Первичная структура
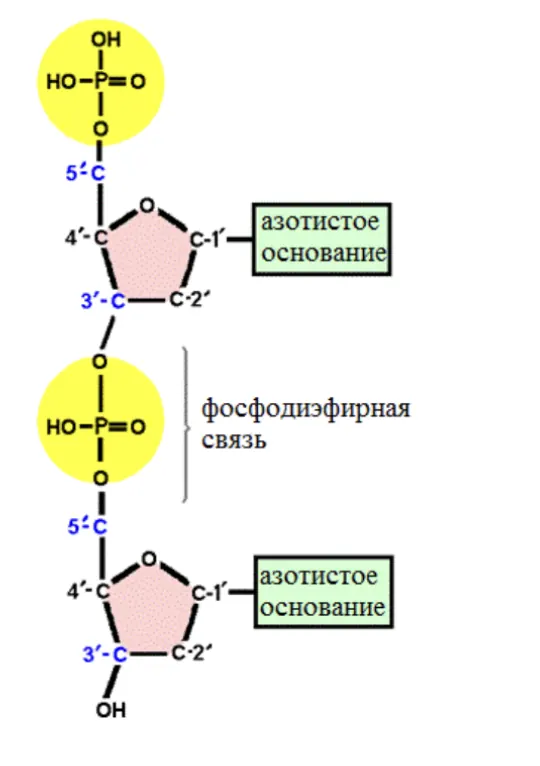
Представляет собой линейную последовательность нуклеотидов, которые соединены друг с другом ковалентными связями. Ковалентные связи образуются между сахарами и фосфатами (фосфодиэфирные связи), таким образом формируется сахарофосфатный остов, к которому прикреплены азотистые основания.
Сахарофосфатный остов цепи ДНКФосфодиэфирная связь соединяет 3′-C одного сахара и 5′-C следующего
Вторичная структура
Представляет собой двойную спираль. Нити ДНК соединены друг с другом с помощью водородных связей (между А и Т две связи, между Г и Ц — три связи). Азотистые основания обращены внутрь двойной спирали, а сахарофосфатный остов — наружу.
А=Т — две водородные связи, Г≡Ц — триБольшая и малая бороздки, сахарофосфатный остов снаружи
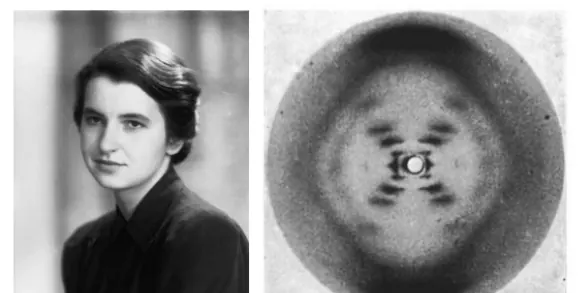
Фотография 51, полученная Розалинд Франклин с помощью рентгеноструктурного анализа, позволила выявить трёхмерную атомарную структуру молекулы ДНК.
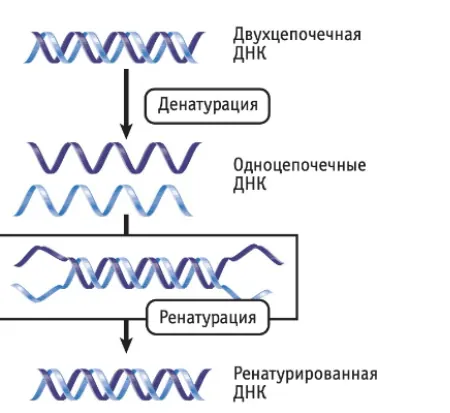
При повышении температуры водородные связи между цепями начинают разрушаться и происходит денатурация (или плавление) ДНК.
Для денатурации цепи, в которой много А и Т, потребуется меньше энергии, чем для цепи, в которой больше Г и Ц, так как между А и Т меньше водородных связей.
Третичная структура
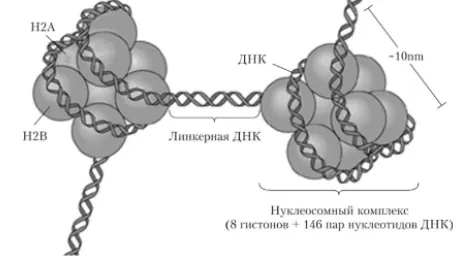
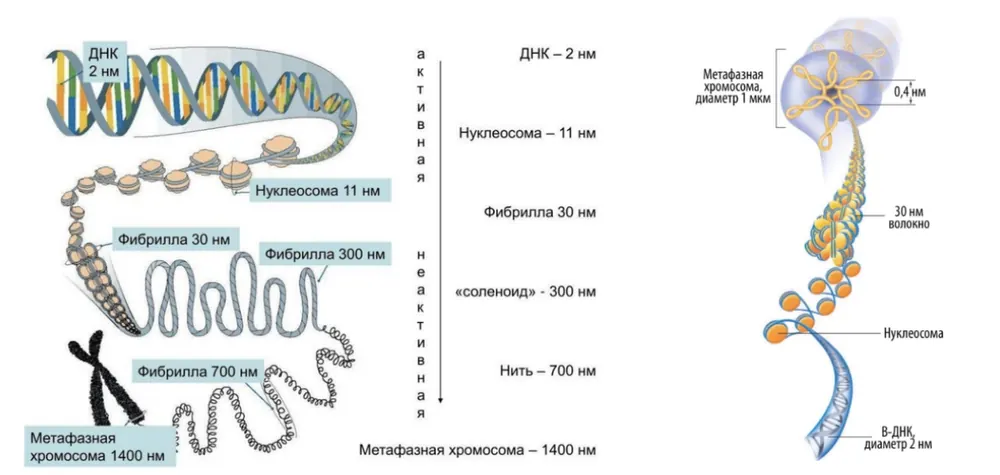
Цепь ДНК, намотанная на белки-гистоны. ДНК, связанная с гистонами, формирует нуклеосому. Каждая нуклеосома состоит из 4 пар гистонов. Вокруг одной нуклеосомной частицы ДНК делает 2,5 оборота. Гистоны — положительно заряженные белки (обладают щелочными свойствами), взаимодействующие с отрицательно заряженной цепью ДНК (обладает кислыми свойствами). Укладка ДНК в нуклеосомную нить повышает плотность её упаковки в 7 раз.
Нуклеосомный комплекс: 8 гистонов + 146 пар нуклеотидов ДНК
Четвертичная структура
Представляет собой наивысшую форму организации ДНК — хроматин и его суперспирализованную форму, хромосомы.
Происходит в интерфазе (перед делением клетки). Включает в себя 3 стадии: 1. Инициация, 2. Элонгация, 3. Терминация.
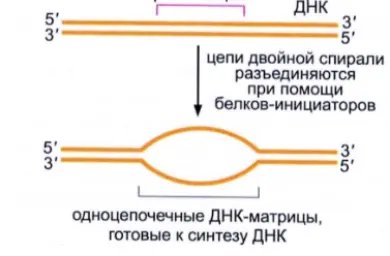
При инициации двойная спираль расплетается, образуется репликативная вилка.
Расплетение двойной спирали ДНК хеликазами→Связывание SSB-белков с одиночными нитями ДНК→Синтез праймера
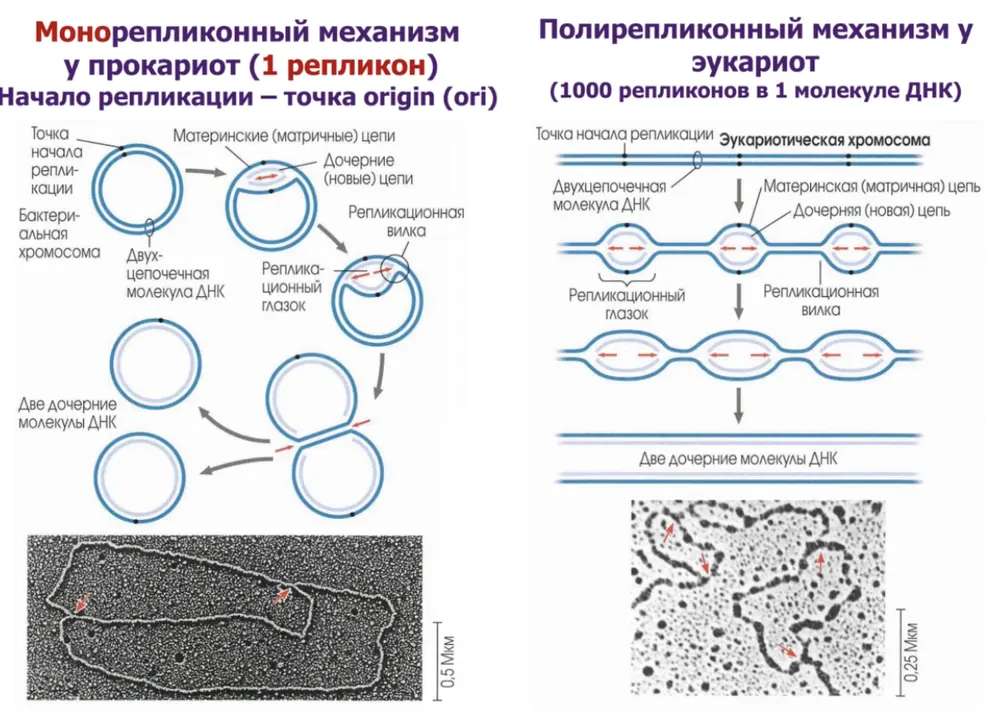
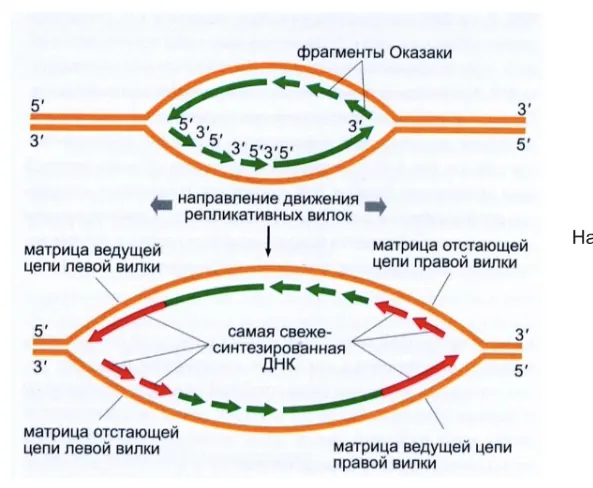
Репликация начинается в точках начала репликации — ориджинах. В каждой точке начала репликации формируются две репликативные вилки (осуществляется двунаправленная репликация).
Репликон — единица процесса репликации, находящаяся под контролем одного ориджина.
Цепи двойной спирали разъединяются при помощи белков-инициаторов
Монорепликонный механизм у прокариот
1 репликон. Начало репликации — точка origin (ori).
Полирепликонный механизм у эукариот
Около 1000 репликонов в 1 молекуле ДНК.
Слева — кольцевая хромосома бактерии (1 репликон), справа — хромосома эукариот (много репликонов)
Последовательность инициации
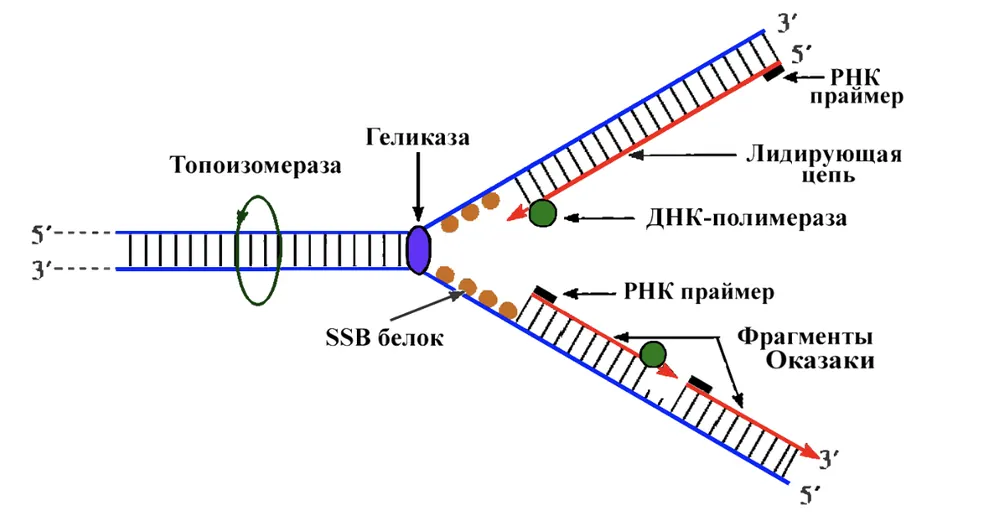
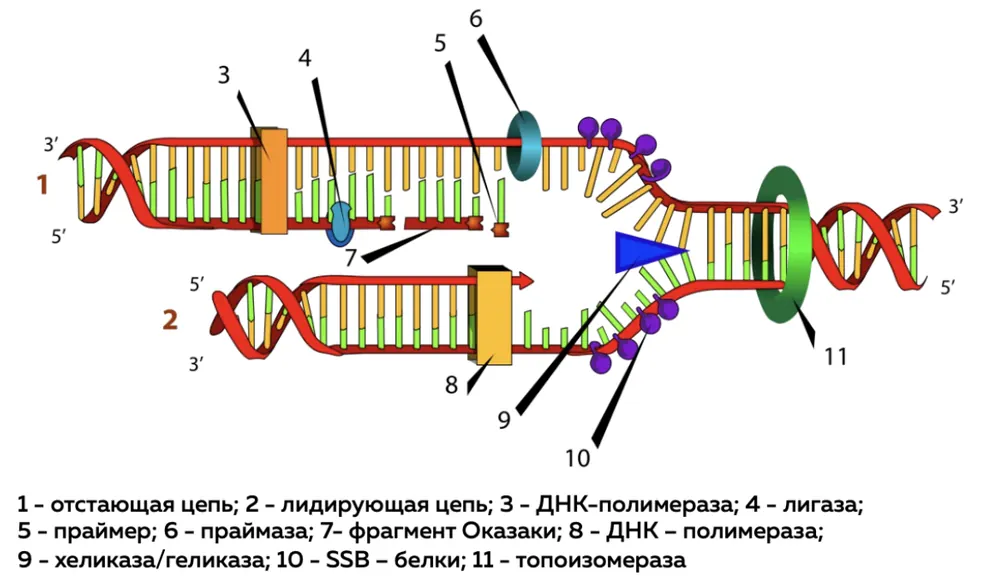
Хеликаза (геликаза) связывается с ориджином и начинает раскручивать и расплетать двойную спираль ДНК в двух направлениях. Образуются две репликативные вилки.
Сформировавшиеся одноцепочечные участки ДНК удерживаются с помощью SSB-белков (ДНК-связывающие белки). Эти белки препятствуют обратному соединению цепей между собой.
Топоизомеразы (ДНК-гиразы) находятся перед репликативной вилкой. Они делают небольшие разрезы, снимая возникающее торсионное напряжение (облегчают раскручивание цепи ДНК хеликазами).
Синтез «затравки» (РНК-праймера) ферментом праймазой (РНК-полимераза). Без праймера синтез ДНК начаться не сможет, так как ДНК-полимераза синтезирует цепи ДНК, присоединяя нуклеотиды к свободной 3′-ОН группе уже существующей цепи (вот как раз к праймеру и будут присоединяться нуклеотиды новой цепи ДНК).
07Элонгация
Происходит синтез лидирующей и отстающей цепей ДНК с помощью ДНК-полимеразы, которая начинает синтез с праймера.
Репликативная вилка
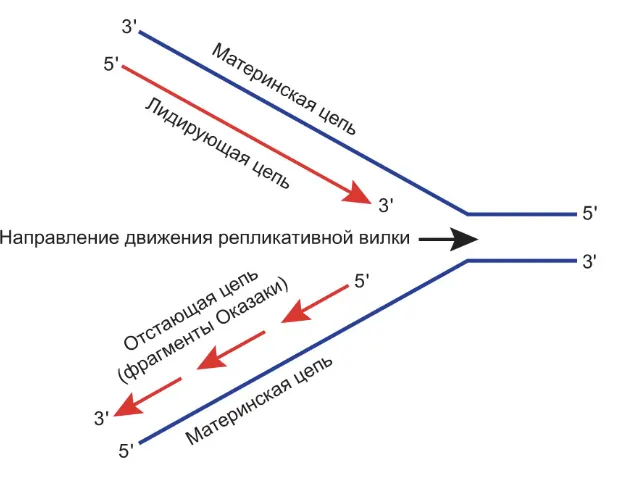
ДНК-полимераза движется по матричной цепи от 3′-конца к 5′-концу (а новая цепь растёт в направлении 5′→3′). Поэтому на одной цепи синтез происходит непрерывно (лидирующая), а на другой — прерывисто, фрагментами Оказаки (отстающая цепь).
Репликационный глазок: две вилки движутся в разные стороныЛидирующая и отстающая (фрагменты Оказаки) цепи
Фрагменты Оказаки между собой потом будет сшивать ДНК-лигаза. Она образует между фрагментами фосфодиэфирную связь.
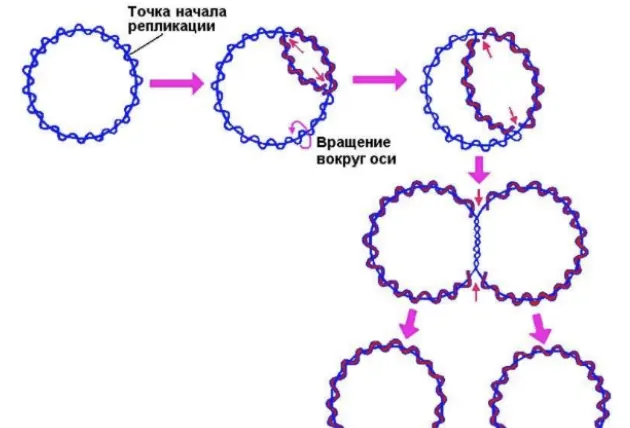
У прокариот происходит в результате встречи репликативных вилок. Она возможна за счёт того, что ДНК имеет кольцевую форму.
У эукариот терминация происходит при столкновении вилок, движущихся в противоположных направлениях, и при достижении конца хромосомы.
Репликация кольцевой ДНК бактерии
Проблема терминации у эукариот
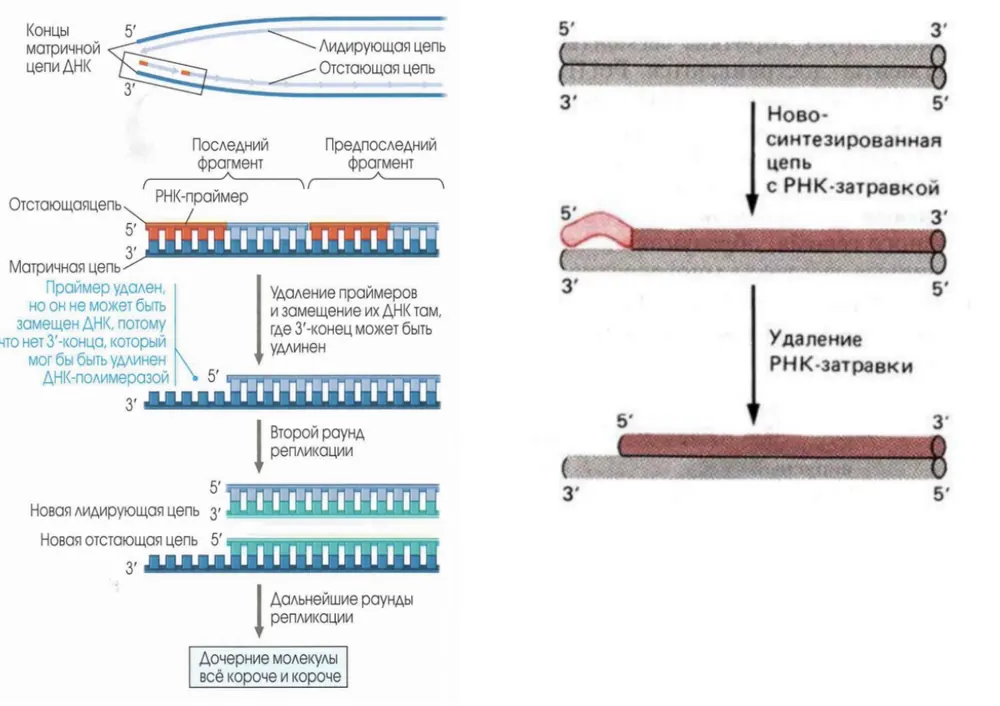
ДНК-полимераза осуществляет синтез дочерней цепи ДНК путём её достраивания с 3′-конца. Когда она доходит до конца хромосомы, она не может полностью реплицировать 3′-конец родительской цепи. Праймер, который присоединён к концу, удаляется. Но на месте праймера не получается достроить цепь ДНК, так как там нет 3′-конца.
После удаления концевого РНК-праймера дочерние молекулы всё короче и короче
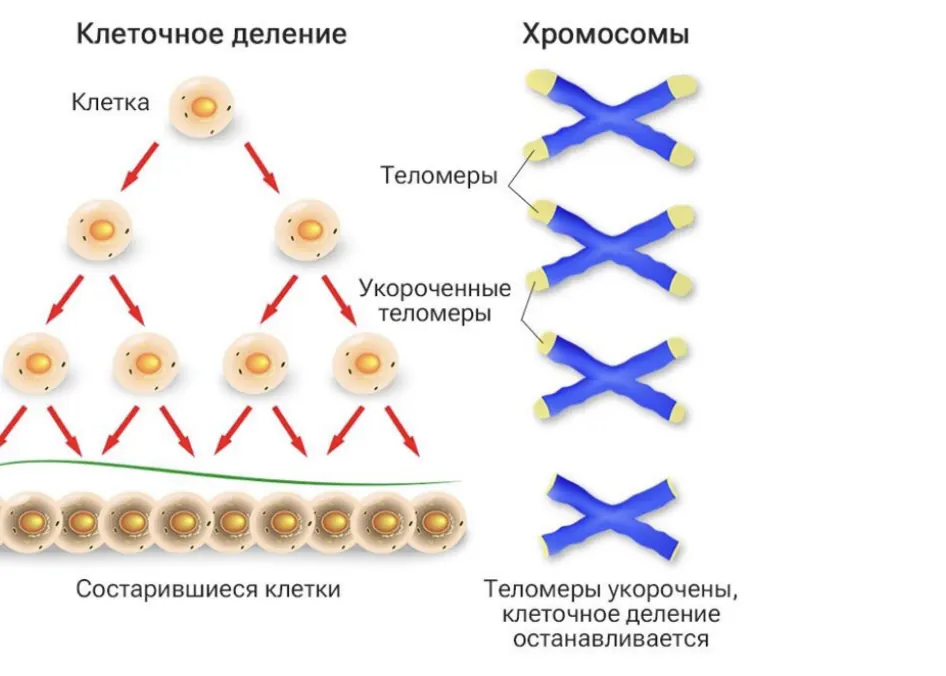
В результате с каждым делением хромосомы укорачиваются. Но клетка эукариот выработала специальную защиту от такого укорачивания. На концах хромосом содержатся участки, не содержащие генов, — теломеры. С каждым циклом репликации теломеры укорачиваются. Теломеры короче в соматических клетках взрослых людей (так как они поделились уже много раз). Есть теломеразная теория старения, суть которой в том, что укорочение теломер связано с процессом старения организма.
Когда теломеры укорочены, клеточное деление останавливается
Теломеры синтезируются особым ферментом теломеразой. В большинстве соматических клеток она неактивна. Высокая активность теломераз наблюдается в стволовых клетках, лейкоцитах, гаметах, опухолевых клетках.
Репликация ДНК у эукариот происходит гораздо медленнее, чем у прокариот. Это объясняется большей степенью конденсации (упаковки) ДНК в хромосомах, а также более сложной и тщательной «проверкой» правильности синтезируемой дочерней цепи специальными репарирующими системами. Репарация ДНК — исправление ошибок, возникающих во время репликации (и не только).
Проблема меньшей скорости репликации ДНК у эукариот решается наличием множества репликонов (полирепликонный механизм).
09Принципы репликации ДНК
Комплементарность (матричность) — новая цепь молекулы ДНК будет синтезироваться по одной из старых цепей по принципу комплементарности (А комплементарен Т, Г комплементарен Ц).
Антипараллельность — две цепи ДНК антипараллельны (одна цепь заканчивается ОН-группой у 3′-конца, другая — остатком фосфорной кислоты у 5′-конца).
Полуконсервативность — образуются 2 дочерние спирали, одна из которых сохраняет в неизменном виде одну из половин материнской ДНК.
Челночный синтез (полунепрерывность) — ДНК-полимераза движется в направлении от 3′ к 5′ (направленность). Формируются лидирующая и отстающая цепь.
Требует наличия «затравки» — РНК-праймера.
10Гипотезы репликации. Опыт Мезельсона и Сталя
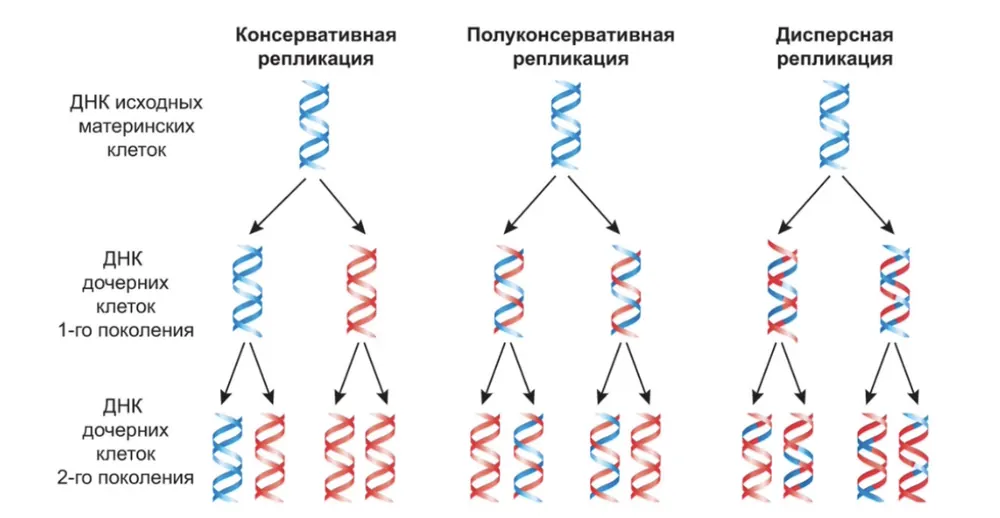
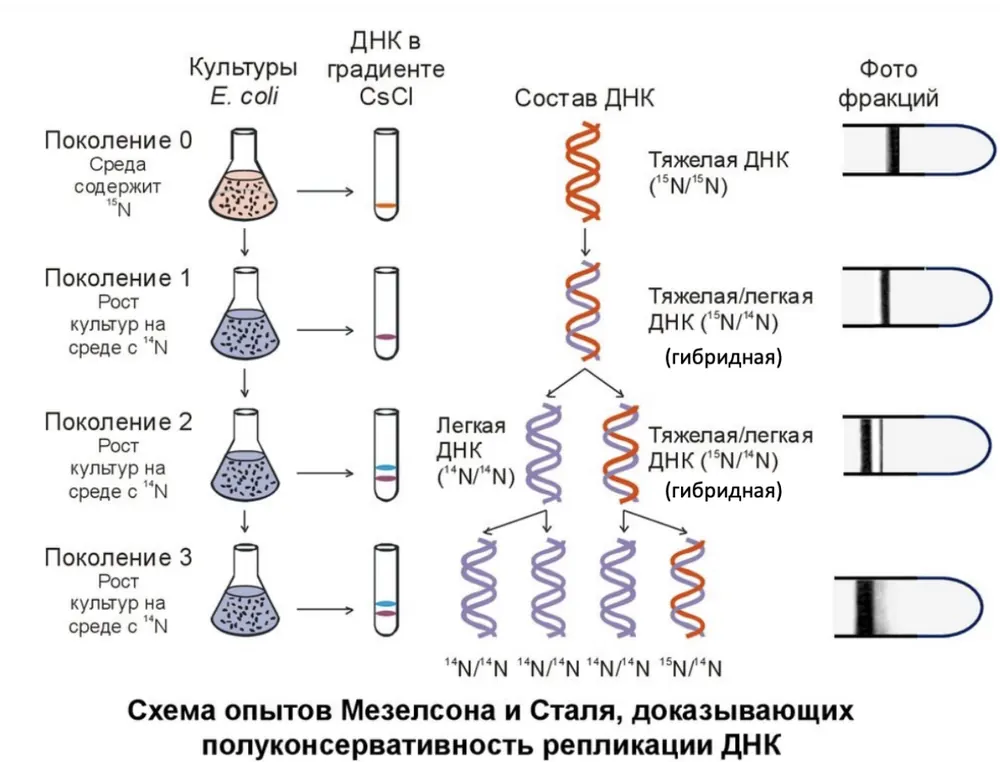
Три гипотезы: консервативная, полуконсервативная, дисперсная
Процесс репликации ДНК полуконсервативен. Это доказали М. Мезельсон и Ф. Сталь с помощью своего эксперимента.
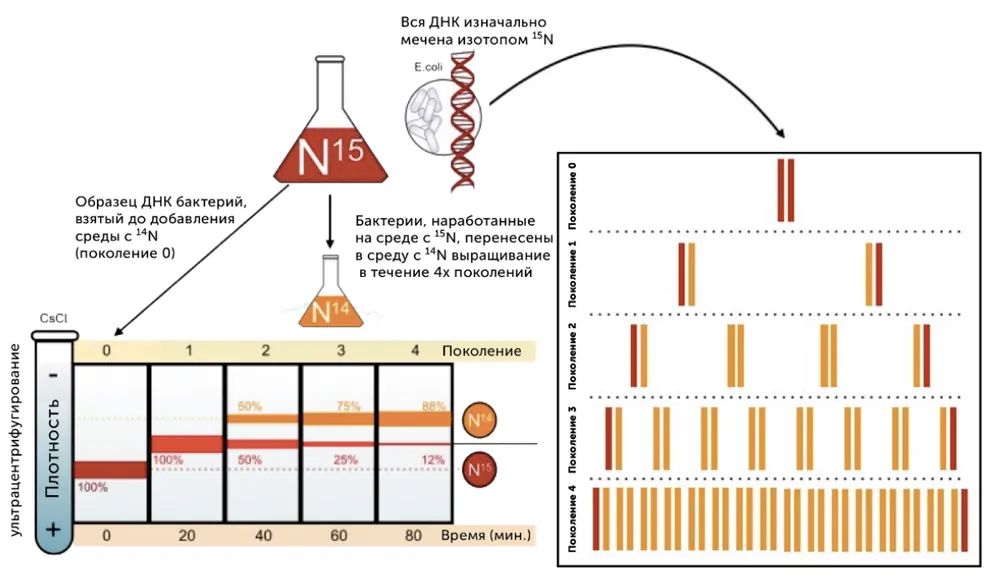
Они выращивали бактерии кишечной палочки на среде с тяжёлым изотопом азота ¹⁵N (метод меченых атомов). Поскольку в ДНК имеются азотистые основания, для их построения бактерии брали тяжёлый изотоп азота ¹⁵N из питательной среды. В результате их ДНК стала тяжёлой.
Затем бактерии пересадили на среду с лёгким изотопом азота ¹⁴N. Один образец был отобран после первой репликации, а другой — после второй репликации. После чего измеряли плотность ДНК (и, косвенно, содержание в ней изотопов ¹⁴N и ¹⁵N), используя центрифугирование в градиенте плотности.
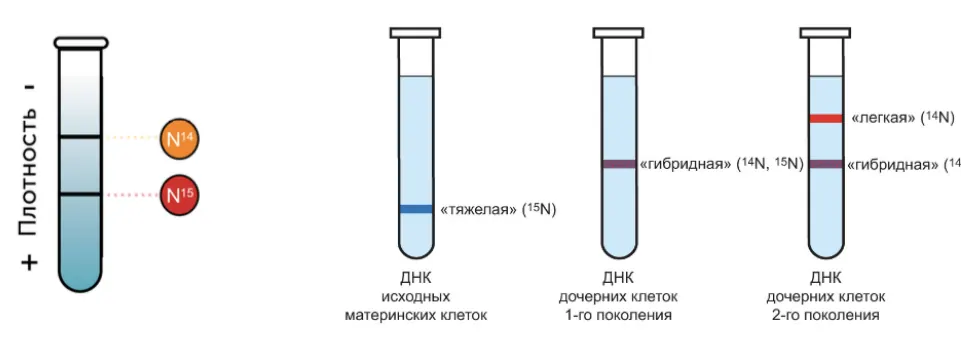
«Тяжёлая» (¹⁵N), «гибридная» (¹⁴N, ¹⁵N) и «лёгкая» (¹⁴N) ДНК после центрифугирования
Консервативный механизм
ДНК дочерних клеток 1-го поколения должна была разделиться на две фракции (50% лёгкая и 50% тяжёлая). ДНК клеток 2-го поколения — тоже на две фракции (75% лёгкая и 25% тяжёлая). Этого не произошло.
Дисперсный механизм
ДНК должна была быть гибридной во всех поколениях. Этого также не произошло.
При полуконсервативном механизме ДНК дочерних клеток 1-го поколения должна была быть гибридной. ДНК дочерних клеток 2-го поколения должна разделиться на 2 фракции (50% гибридная, 50% лёгкая). Так и получилось на практике. И в каждом последующем поколении бактерий процент гибридной ДНК уменьшался, а процент лёгкой ДНК возрастал.
Поколения 0–4: 100% → 50/50 → 75/25 → 88/12 (лёгкая/гибридная)Схема опытов Мезельсона и Сталя, доказывающих полуконсервативность репликации ДНК